СВЯЗЬ УПИТАННОСТИ, ЗРЕЛОСТИ ГОНАД И МАССЫ ТЕЛА С РЕПРОДУКТИВНЫМИ ПОКАЗАТЕЛЯМИ САМОК БЕЛОГО АМУРА ПРИ ГОРМОНАЛЬНОЙ СТИМУЛЯЦИИ
Введение
Белый амур (Ctenopharyngodon idella) относится к важным объектам пресноводной аквакультуры [1]. В прудовом рыбоводстве получение посадочного материала опирается на управляемое воспроизводство. Результат гормональной стимуляции определяется не только препаратом, но и готовностью производителей и условиями содержания; исследования белого амура показывают изменчивость овуляции, оплодотворения и выклева при различных протоколах [2].
Производственные наблюдения за искусственным воспроизводством китайских карпов подтверждают необходимость раздельного учета последовательных репродуктивных этапов [3]. При оценке зрелости следует учитывать также биологию вида и особенности конкретной популяции. Гистологические исследования белого амура в природных системах выявили неодновременное развитие ооцитов и показали, что гонадосоматический индекс (ГСИ) не обеспечивает безошибочную классификацию зрелости [4]. Эти результаты не переносятся автоматически на прудовые хозяйства, но подчеркивают значение прямой оценки гонад.
Размер тела может характеризовать потенциальную продуктивность, однако не является непосредственной мерой качества икры. Формирование желтка и накопление питательных веществ зависят от физиологического состояния производителей [5, 6]. На модельных рыбах показана связь состава белков икры с жизнеспособностью эмбрионов [7]. Поэтому масса и коэффициент упитанности представляют интерес как доступные прижизненные признаки, но их практическая ценность должна проверяться по фактическому выходу потомства.
Связанные групповые результаты исследования белого амура в трех хозяйствах Ташкентской области, включавшего 540 рыб, представлены в предыдущей публикации автора [8]. Настоящая работа сосредоточена на индивидуальных связях массы, упитанности и стадии зрелости с результатами гормональной стимуляции и на ограничениях применения этих признаков при отборе. Сопоставление отобранных и неотобранных рыб используется как характеристика наблюдаемого материала, а не как независимое доказательство причинной эффективности процедуры.
Цель исследования – оценить связи индивидуальных морфобиологических признаков самок белого амура с получением икры, оплодотворением, выклевом и выживаемостью личинок, а также определить границы интерпретации расчетных ориентиров для формирования маточного стада.
Материал и методы исследования
Хозяйства и оценочная выборка
Исследование проводили в 2023–2025 гг. в трех хозяйствах Ташкентской области: KHORROT FISH HOUSE – монокультура, площадь пруда 1,0 га; ZAFAR ASADBEK BALIG‘I – поликультура, 0,2 га; IMKON BALIQ FAYZ – поликультура, 2,0 га. Ежегодно случайным образом отбирали по 10 рыб на сочетание хозяйства, возраста (3, 4 и 5 лет) и пола. Объем оценочной выборки составил 540 рыб, включая 270 самок и 270 самцов. Связанные результаты этой исследовательской программы опубликованы ранее [8].
Измеряли общую длину L, стандартную длину l и массу Q по методическим подходам И. Ф. Правдина [9]. Коэффициент Фултона рассчитывали как K = 100Q/l³, где Q выражена в граммах, а l – в сантиметрах. Зрелость гонад определяли по шестистадийной шкале О. Ф. Сакун и Н. А. Буцкой [10], используя внешние признаки и, у самок, пробу ооцитов, полученную внутриовариальным катетером. Прижизненная оценка зрелости перед стимуляцией соответствует общему подходу к подбору производителей для индуцированного нереста [11]. ГСИ определяли только у вскрытых рыб.
К отобранной группе относили рыб, одновременно соответствовавших следующим признакам: возраст 3–5 лет; отсутствие клинических признаков заболеваний, повреждений и деформаций; масса и K в пределах принятого для возрастно-половой группы диапазона; гонады на IV или V стадии. У самок учитывали однородность и легкое разделение ооцитов в катетерной пробе, у самцов – белые густые молоки без видимых примесей при легком надавливании на брюшко. Рыб, не соответствовавших хотя бы одному условию, относили к неотобранной группе. Расчетные ориентиры M − SD, приведенные ниже, получены из оценочной выборки и рассматриваются отдельно от фактически применявшихся критериев.
Гормональная стимуляция и учет потомства
Репродуктивные записи получены для 42 самок хозяйства IMKON BALIQ FAYZ: 32 отобранных (10 в 2023 г., 11 в 2024 г. и 11 в 2025 г.) и 10 неотобранных, исследованных только в 2025 г. Нерест проводили с 21 мая по 9 июня при температуре 22,8–25,4 °C; средняя температура составляла 23,89 ± 0,68 °C. Следовательно, сравнение статуса отбора частично связано с годом наблюдений.
Ацетонированный гипофиз обыкновенного карпа гомогенизировали в стерильном растворе NaCl концентрацией 0,65 % непосредственно перед применением. Препарат вводили внутримышечно у основания спинного плавника в два приема: предварительная доза 0,4 мг/кг и разрешающая доза 4,0 мг/кг по индивидуальной массе самки. После разрешающей инъекции самок содержали в проточных емкостях, овуляцию проверяли осторожной пальпацией. У неовулировавших самок икру не отцеживали.
Икру собирали в сухие емкости и осеменяли сухим способом молоками одного индивидуально меченного самца для каждой самки. Икру инкубировали в проточных аппаратах; погибшие и пораженные грибами икринки удаляли сифоном. Личинок учитывали через 6–8 суток после нереста. Сведения о числе неовулировавших самок и латентном периоде в исходных материалах отсутствуют, поэтому эти записи не позволяют оценить вероятность успешной овуляции для всех стимулированных рыб.
Число полученных овулировавших икринок (в исходной рукописи – «абсолютная плодовитость») оценивали гравиметрически по массе всей порции и числу икринок в навеске. Рабочая плодовитость обозначает число пригодных икринок, фактически использованных для оплодотворения; относительная плодовитость – рабочую плодовитость на килограмм массы самки. Оплодотворение выражали в процентах от использованной икры, выклев и выживаемость до внешнего питания – от числа оплодотворенных икринок. Отдельно учитывали число личинок, достигших внешнего питания, на самку. Число полученных икринок не приравнивали к полной потенциальной плодовитости яичника.
Статистический анализ
В исходном анализе использованы корреляция Пирсона, t-критерий Уэлча и критерий Манна – Уитни как непараметрическая проверка. Многофакторные линейные модели включали статус отбора, стадию зрелости (V относительно IV), K, массу и возраст (n = 42). Расчеты выполнены автором в Python 3 с использованием SciPy [12] и statsmodels [13]. Результаты представлены как M ± SD, коэффициенты регрессии – как β ± SE; уровень значимости принят равным 0,05. Индивидуальные записи и код расчетов в состав представленной рукописи не входят; приведенные коэффициенты и p-значения сохранены без повторной оценки по первичным данным.
Мощность оценивали для двустороннего t-теста при α = 0,05 и мощности 80 % с использованием стандартизованного эффекта d. Такая оценка служит ориентиром для последующего планирования и не заменяет проверку устойчивости многофакторной модели [14]. Нижние ориентиры массы и K рассчитывали как M − SD в каждой возрастно-половой группе. Для переноса этих ориентиров на новые хозяйства необходимы независимая выборка и оценка ошибок классификации.
Результаты исследования и их обсуждение
Репродуктивные показатели после стимуляции
Сводные показатели 42 самок приведены в табл. 1. Коэффициенты вариации оплодотворения, выклева и выживаемости составляли 4,0–6,9 %. Для рабочей и относительной плодовитости и числа личинок на самку вариабельность была выше. Это различие характеризует данный набор результативных нерестов, но не весь исходный контингент стимулированных самок.
Масса тела, стадия зрелости и упитанность
Статистически значимой линейной связи массы с числом полученных икринок не выявлено (r = -0,13; p = 0,427); возрастные средние составляли 509,0 тыс. у трехлетних и 501,4 тыс. у пятилетних самок. Относительная плодовитость отрицательно коррелировала с массой (r = -0,90; p < 0,001). Поскольку масса входит в знаменатель относительной плодовитости, эта связь включает математическую зависимость и сама по себе не доказывает снижение биологического качества крупных самок (табл. 2).
При парном анализе K не был статистически значимо связан с числом икринок, оплодотворением или выживаемостью. Различия между IV и V стадиями по числу икринок и оплодотворению также не достигали уровня 0,05. Эти результаты не доказывают отсутствия связи или эквивалентности стадий.
Таблица 1
Репродуктивные показатели стимулированных самок (n = 42)
|
Показатель |
M ± SD |
CV, % |
|
Масса тела, г |
3461,7 ± 693,0 |
20,0 |
|
Получено икринок, тыс. |
504,6 ± 36,1 |
7,2 |
|
Рабочая плодовитость, тыс. |
440,9 ± 42,7 |
9,7 |
|
Относительная плодовитость, тыс./кг |
133,0 ± 31,6 |
23,8 |
|
Оплодотворение, % |
84,11 ± 3,84 |
4,6 |
|
Выклев, % оплодотворенной икры |
78,56 ± 3,13 |
4,0 |
|
Выживаемость до внешнего питания, % оплодотворенной икры |
73,37 ± 5,05 |
6,9 |
|
Личинки на внешнем питании, тыс./самку |
275,1 ± 50,5 |
18,4 |
Примечание: составлена автором на основе полученных данных в ходе исследования. M – среднее; SD – стандартное отклонение; CV – коэффициент вариации.
Таблица 2
Парные связи признаков с результатами воспроизводства
|
Сопоставление |
Статистика |
p |
|
Масса – число полученных икринок |
r = −0,13 |
0,427 |
|
Масса – относительная плодовитость |
r = −0,90 |
< 0,001 |
|
K – число полученных икринок |
r = −0,01 |
0,933 |
|
K – оплодотворение |
r = −0,21 |
0,179 |
|
K – выживаемость до внешнего питания |
r = 0,06 |
0,721 |
|
Стадии IV и V – число икринок, тыс. |
503,0 и 507,8 |
0,696 |
|
Стадии IV и V – оплодотворение, % |
83,96 и 84,41 |
0,739 |
Примечание: составлена автором на основе полученных данных в ходе исследования. n = 42; стадия IV – 28 самок, стадия V – 14 самок.
Таблица 3
Многофакторные линейные модели (β ± SE; n = 42)
|
Предиктор |
Икринки, тыс. |
Оплодотворение, % |
Выклев, % |
Выживаемость, % |
|
Отобранные относительно неотобранных |
66,33 ± 8,79*** |
8,19 ± 0,57*** |
5,73 ± 0,72*** |
11,19 ± 0,62*** |
|
Стадия V относительно IV |
10,14 ± 7,90 |
0,99 ± 0,51 |
0,63 ± 0,65 |
-0,27 ± 0,55 |
|
K, на 1 единицу |
22,42 ± 40,07 |
-3,58 ± 2,60 |
-1,31 ± 3,29 |
7,14 ± 2,81* |
|
Масса, на 100 г |
-0,54 ± 2,13 |
0,20 ± 0,14 |
-0,21 ± 0,18 |
0,07 ± 0,15 |
|
R² модели |
0,64 |
0,87 |
0,68 |
0,91 |
Примечание: составлена автором на основе полученных данных в ходе исследования.
* p < 0,05; *** p < 0,001. Возраст включен во все модели; его коэффициенты в исходной сводной таблице не приведены и описаны как незначимые. R² относится ко всей модели. Год не включен в перечисленный набор предикторов.
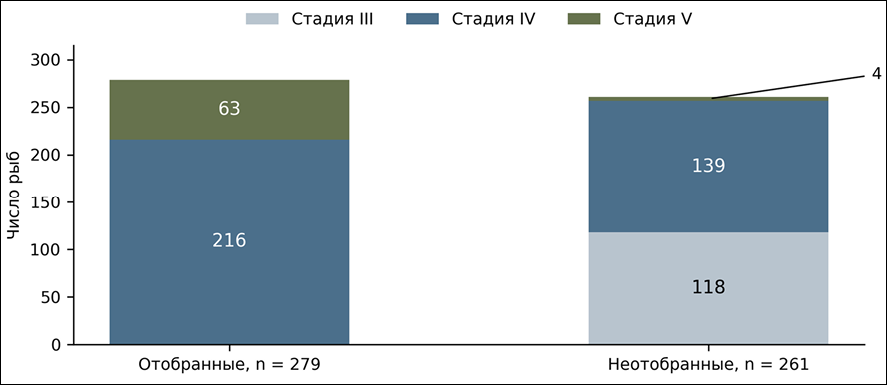
Распределение рыб обоих полов по стадиям зрелости гонад (n = 540) Примечание: составлен по численностям, приведенным в авторской рукописи; данные самцов и самок объединены
В многофакторных моделях статус отбора имел положительные коэффициенты для всех четырех исходов (табл. 3). Значения R² = 0,64–0,91 характеризуют модели в целом; их нельзя приписывать только статусу отбора. Коэффициент для стадии V в модели оплодотворения составил 0,99 п. п. (p = 0,062). Для K положительная условная связь выявлена только с выживаемостью: β = 7,14 ± 2,81 на единицу K, что соответствует 0,714 п. п. при увеличении K на 0,1. При отсутствии учета года и независимой валидации это является ассоциацией внутри данной выборки, а не установленным причинным или внешне подтвержденным прогностическим эффектом.
Оценочная выборка и критерии отбора
Из 540 рыб критериям соответствовали 279 (51,7 %), к неотобранным отнесена 261 особь. Все 118 рыб с гонадами на III стадии находились в неотобранной группе; из 67 рыб на V стадии отобраны 63 (94,0 %). Среди неотобранных было 139 рыб на IV стадии и 4 самки на V стадии (рисунок). Отсутствие III стадии в отобранной группе следует из самого определения критериев и не является независимой проверкой их точности.
По общей длине, массе и K статистически значимых различий между отобранными и неотобранными рыбами каждого пола не выявлено (табл. 4). У самцов ГСИ был выше в отобранной группе (4,46 против 3,89 %; p < 0,001). У самок нескорректированное различие не достигало уровня значимости; в описанной автором модели с учетом хозяйства и возраста разность составляла 0,25 п. п. (p < 0,001). Полная таблица этой дополнительной модели в исходной рукописи не представлена.
Расчетные ориентиры и планирование выборки
Нижние ориентиры массы и K вычислены как M − SD по возрастно-половым группам (табл. 5). При нормальном распределении ниже такого значения для отдельного показателя находится около 16 % наблюдений. Этот процент не характеризует суммарное исключение при одновременном применении нескольких критериев. Полученные величины описывают конкретную выборку и не являются проверенными универсальными порогами допуска к воспроизводству.
Таблица 4
Морфобиологические признаки оценочной выборки (M ± SD)
|
Признак |
Пол |
Отобранные |
Неотобранные |
p Уэлча |
p Манна – Уитни |
|
L, см |
Самки |
70,92 ± 6,15 |
70,28 ± 5,52 |
0,371 |
0,329 |
|
L, см |
Самцы |
71,16 ± 5,51 |
70,61 ± 5,96 |
0,438 |
0,309 |
|
Q, г |
Самки |
3268,8 ± 722,9 |
3155,3 ± 699,4 |
0,196 |
0,201 |
|
Q, г |
Самцы |
3269,1 ± 685,4 |
3227,1 ± 728,3 |
0,626 |
0,680 |
|
K |
Самки |
1,43 ± 0,10 |
1,41 ± 0,09 |
0,279 |
0,243 |
|
K |
Самцы |
1,41 ± 0,09 |
1,43 ± 0,09 |
0,064 |
0,065 |
|
ГСИ, % |
Самки |
12,51 ± 1,82 |
12,21 ± 1,96 |
0,247 |
0,084 |
|
ГСИ, % |
Самцы |
4,46 ± 0,80 |
3,89 ± 0,89 |
<0,001 |
<0,001 |
Примечание: составлена автором на основе полученных данных в ходе исследования. Самки: n = 156 и 114; для ГСИ – 122 и 104 соответственно. Самцы: n = 123 и 147. ГСИ определяли только у вскрытых особей. Связанные групповые результаты опубликованы в [8]; значения таблицы сохранены по авторской рукописи.
Таблица 5
Исследовательские нижние ориентиры массы и упитанности
|
Возраст, лет |
Пол |
Масса, г |
K |
|
3 |
Самки |
2180 |
1,32 |
|
3 |
Самцы |
2210 |
1,32 |
|
4 |
Самки |
2990 |
1,32 |
|
4 |
Самцы |
3020 |
1,32 |
|
5 |
Самки |
3810 |
1,33 |
|
5 |
Самцы |
3870 |
1,34 |
Примечание: составлена автором на основе полученных данных в ходе исследования. M − SD; массу округляли вниз до 10 г, K рассчитывали по стандартной длине. Значения требуют независимой валидации.
При группах 32 и 10 самок минимальный эффект, обнаруживаемый двусторонним t-тестом с мощностью 80% при α = 0,05, соответствует d ≈ 1,04. Для равных групп ориентировочно необходимы 19 самок на группу при d = 0,94, 26 при d = 0,80 и 64 при d = 0,50. Поэтому размер 20–26 самок подходит только для проверки относительно крупных эффектов; для умеренных эффектов и валидации многофакторной модели необходим иной расчет с учетом структуры данных [14].
В исследованной группе не обнаружена значимая линейная связь массы самки с количеством полученных после стимуляции икринок. Это не означает отсутствия зависимости потенциальной плодовитости от размеров тела в целом: здесь учтены овулировавшие икринки, а не все ооциты яичника. Современные данные по репродуктивной биологии белого амура указывают на сложность организации созревания [4]. Сопоставление хозяйств и технологий требует одинакового определения показателя и знаменателей процентов.
Сильная отрицательная корреляция относительной плодовитости с массой должна интерпретироваться с учетом ее формулы. Деление рабочей плодовитости на массу создает зависимость между показателем и одним из его компонентов. Поэтому относительную плодовитость нельзя использовать как самостоятельное доказательство преимущества мелких самок. Для выбора производителей полезно одновременно рассматривать абсолютный выход пригодной икры, ее оплодотворение и число жизнеспособных личинок.
Близкие средние у самок на IV и V стадиях и незначимые p-значения не устанавливают эквивалентности. Для такого вывода необходимы заранее выбранные допустимые границы различий и специальная процедура проверки [15]. Кроме того, стадирование в данной работе не подтверждалось гистологически. Исключение III стадии по правилу отбора логично с технологической точки зрения [11], но само по себе не подтверждает прогностическую точность этого правила.
Положительный коэффициент K в модели выживаемости согласуется с биологической ролью состояния производителей в формировании икры [5, 6]. Однако липидный состав, белки икры и энергетические резервы здесь не измеряли, поэтому механизм не установлен. Данные протеомных исследований на других рыбах [7] дают только физиологический контекст. Различие между слабой парной корреляцией и значимым коэффициентом после учета других признаков может зависеть от структуры выборки и взаимосвязи предикторов.
Особое значение имеет смешение статуса отбора и года: неотобранные самки представлены только в 2025 г. Различия между сезонами могут влиять на инкубационные условия, качество молок и работу персонала. Для проверки устойчивости результата необходимы анализ внутри 2025 г. и модель, учитывающая год, при наличии достаточного числа наблюдений. Высокое R² на обучающей выборке не подтверждает качество прогноза в новом хозяйстве.
Сходство размеров отобранных и неотобранных рыб при различии ГСИ показывает, что размерный отбор не исчерпывает оценку репродуктивного состояния. Вместе с тем ГСИ получен при вскрытии и не может непосредственно служить прижизненным критерием для тех же производителей. Практическая процедура должна опираться на оценку живой рыбы и катетерную пробу, а роль стадирования, условий стимуляции и критериев качества икры проверяться совместно [2, 3, 11].
Расчетные значения M − SD следует рассматривать как гипотезы для дальнейшей проверки. Их применение в качестве обязательных производственных нормативов до независимой оценки может исключать пригодных рыб или сохранять непригодных. Будущая валидация должна заранее определить целевой исход, приемлемый размер эффекта, правила работы с неовулировавшими самками и способ учета повторных наблюдений.
Ограничения исследования. Репродуктивный анализ выполнен в одном хозяйстве на 42 самках; распределение по группам не было случайным. Контроль представлен только одним годом. Число неовулировавших рыб и латентный период не зарегистрированы, гонады стадированы без гистологического подтверждения. Не представлены индивидуальная база, диагностические показатели моделей, оценки мультиколлинеарности и внешняя валидация. Связанные групповые данные исследовательской программы опубликованы ранее [8]; дополнительный вклад настоящего анализа ограничен изучением индивидуальных ассоциаций и условий проверки предложенных ориентиров.
Заключение
В анализируемых записях 42 самок белого амура не обнаружена значимая линейная связь массы с числом полученных после гормональной стимуляции икринок. Отрицательная связь относительной плодовитости с массой включает математическую зависимость, обусловленную способом расчета показателя.
В многофакторной модели K имел положительную условную связь с выживаемостью личинок. Незначимые различия IV и V стадий не доказывают их эквивалентности, а отсутствие учета года ограничивает трактовку коэффициентов статуса отбора.
В оценочной выборке из 540 рыб отбор характеризовал прежде всего репродуктивное состояние, а не размеры тела. Расчетные нижние ориентиры массы и упитанности требуют проверки на независимых хозяйствах и сезонах. Их следует использовать для планирования валидации, а не как уже подтвержденные производственные нормативы.
Конфликт интересов
Финансирование
Библиографическая ссылка
URL: https://science-biology.ru/article/view?id=1483 (дата обращения: 19.11.2026).
DOI: https://doi.org/10.17513/srbs.1483